水稻病毒是一类重要的病原物,在我国种类多、危害重,防治十分困难。近年来,为了有效防控水稻病毒病害的发生,许多国内外学者围绕抗性基因挖掘方向已经取得了良好进展,但是研究往往仅围绕某一种或者某一类的水稻病毒,缺乏对不同类型水稻病毒致病共性特点的了解。近日,宁波大学植物病毒学研究所陈剑平院士团队孙宗涛课题组在Cell Press细胞出版社旗下期刊Trends in Microbiology发表题为 “Exploring the shared pathogenic strategies of independently evolved effectors across distinct plant viruses”的综述论文。该文章全面系统地总结了该团队及国内外同行在病毒致病共性领域的最新进展。
植物为了应对多种生物和非生物胁迫会进化出一系列复杂的防御策略,植物激素在水稻的广谱抗病毒免疫过程中发挥重要作用(图1)。与此同时,植物病毒也能进化出多种致病策略来抑制寄主免疫,这种病毒-寄主博弈的过程被称为“军备竞赛”。该文详细阐述了不同类型水稻病毒都能编码一类独立进化的关键致病蛋白,通过靶向植物激素途径多个相同的寄主因子传播致害的最新进展(图2),重点解析了这类关键致病蛋白在高级空间结构以及生物学功能上的共性特征(图3),为绿色广谱小分子化和药物的开发提供潜在位点和科学依据,并对水稻病毒病害的精准防控进行了展望。
1. 植物激素茉莉酸是水稻广谱抗病毒防御免疫调控网络的重要枢纽
病毒侵染寄主后往往会形成矮化、褪绿、皱缩、畸形等生理表型,然而这些症状的形成大多与其植物体内的激素动态水平密切相关。植物激素是一类重要的小分子化合物,在调控植物生长发育以及抗病毒免疫等方面都能发挥重要作用。其中,与生长相关的激素有生长素(Auxin)、赤霉素(GA)和油菜素甾醇(BR),与抗性相关的则主要包括茉莉酸(JA)、水杨酸(SA)和脱落酸(ABA)。当植物面临多种病毒胁迫时,不同类型的植物激素都能通过JA关键枢纽整合到寄主的广谱抗病毒免疫调控网络(图1)。例如在水稻黑条矮缩病毒(RBSDV)侵染过程中,受体样蛋白OsRLP1通过激活MAPK级联反应,协同Auxin和SA信号通路共同激活JA介导的水稻广谱抗病毒免疫,而BR、ABA则通过拮抗JA信号途径更有利于病毒的侵染。但是JA的过度积累会影响植物的生长和发育,因此植物还进化出一系列复杂的负反馈调节机制,如OsNF-YA/C核转录因子等通过抑制OsMYC2的转录活性协调JA信号通路平衡植物的生长与免疫。基于当前对水稻广谱抗病毒调控网络模型的理解,未来通过有针对性地开发植物激素途径这些重要生长-免疫调节因子,可为水稻病毒病害的精准防控以及遗传改良作物抗病性提供重要基因资源和策略。
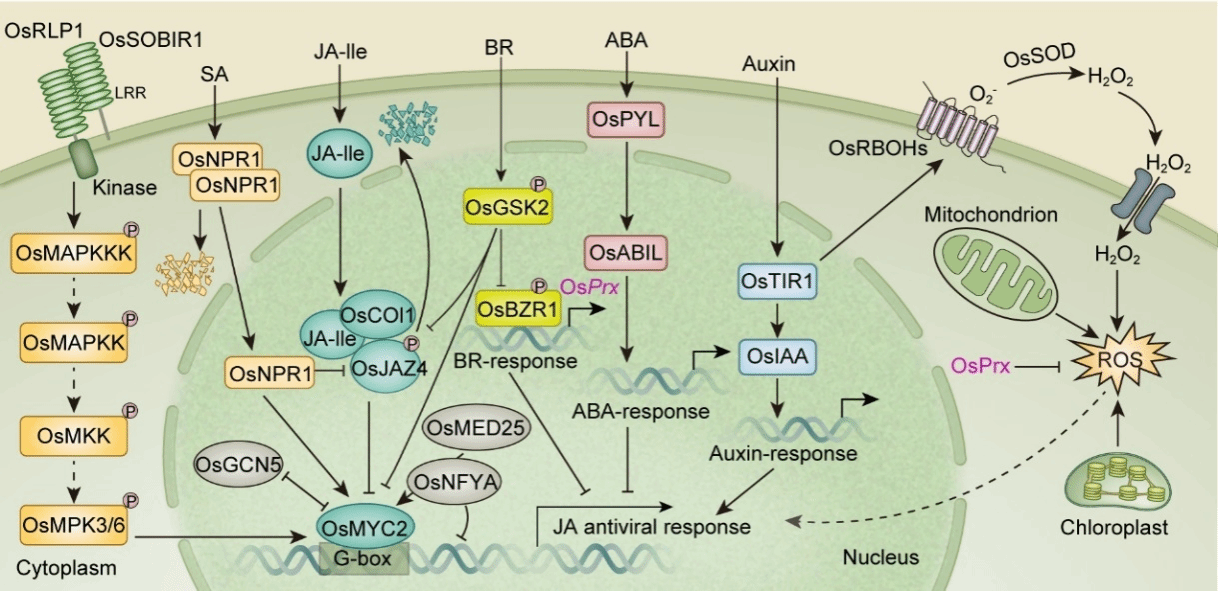
图1. 植物激素通过整合JA信号通路介导水稻的广谱抗病毒免疫
2. 不同类型水稻病毒的保守致病策略
植物病毒没有完善的细胞结构,仅由DNA(RNA)和蛋白质组成,不能独立生存,只有依靠寄主植物获取营养来完成自身生命周期所需的生命活动。因此,在致病过程中往往通过编码少数几个关键致病蛋白劫持或者利用寄主因子来完成自身侵染,揭示不同类型病毒致病机制上的共同特点(图2)可为病毒病害的绿色防控提供重要理论支持。在我国水稻病毒的种类繁多,其中南方水稻黑条矮缩病毒(SRBSDV,双链RNA病毒)、水稻条纹病毒(RSV,多分体负义单链RNA病毒)和水稻条纹花叶病毒(RSMV,负义单股RNA病毒)是一类危害较重并且极具代表性的水稻病毒。在致病过程中,尽管它们在分类地位和基因组信息上都不具有任何相似性,但却都能编码一类关键致病蛋白(SRBSDV SP8,RSV P2,RSMV M):1)通过与GA途径重要负调控因子SLR1以及SA途径关键调控因子OsNPR1等互作的方式参与抗性蛋白的稳态调节;2)作为转录抑制子调控JA途径核心转录因子OsMYC2和Auxin途径响应因子OsARF17的转录,直接或者间接地削弱JA介导的广谱抗病毒能力,以促进不同类型水稻病毒的侵染和介体昆虫的传播。除此之外,植物激素乙烯信号途径以及经典的细胞自噬和RNA沉默通路也能成为这类病毒攻击的重要靶标。
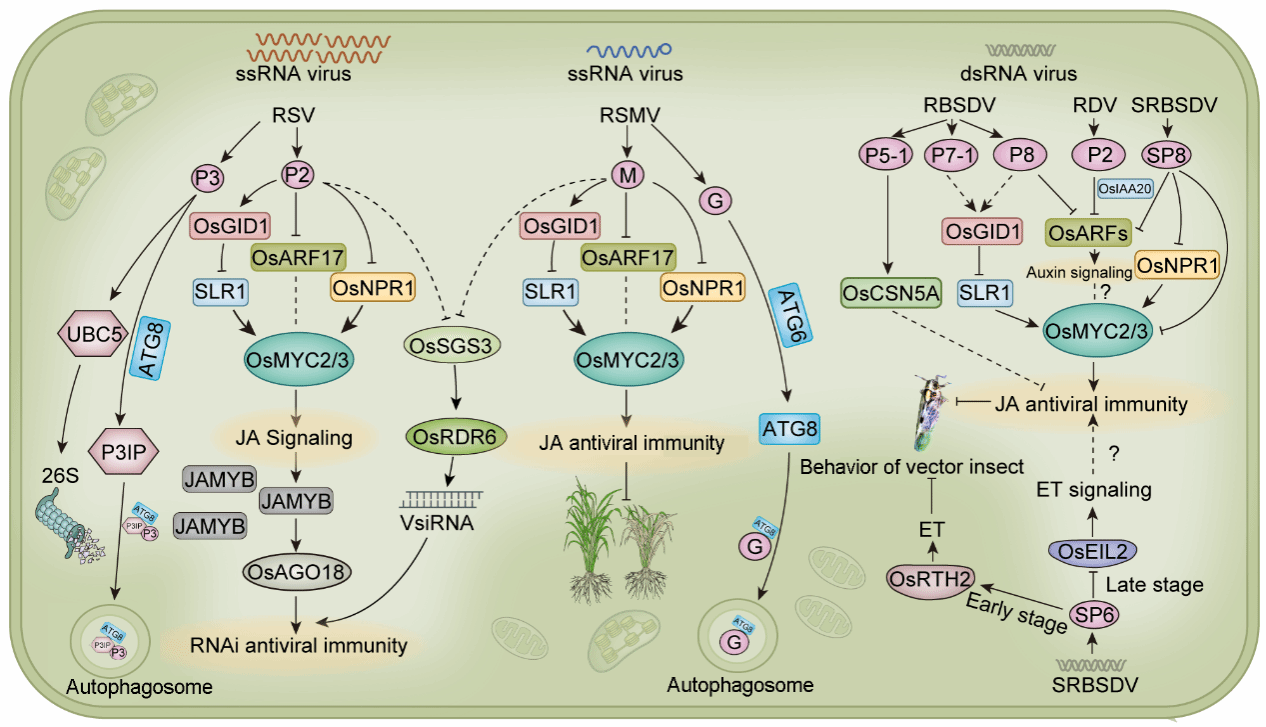
图2. 不同类型水稻病毒的保守致病策略
3. 不同水稻病毒关键致病蛋白的共性特征
1)这类独立进化的关键致病蛋白在空间结构上相似
不同类型水稻病毒在致病策略上的相似性,归根到底是由其编码关键致病蛋白的保守生物学功能导致,而蛋白质功能则由肽链的空间结构决定。基于AlphaFold2算法预测发现在我国常见水稻病毒SRBSDV、RSV、RSMV、RDV、RGDV和RRSV编码的关键致病蛋白中,只有SRBSDV SP8蛋白、RSV P2蛋白和RSMV M蛋白的C端具有类似的α螺旋和β折叠稳定堆叠结构(图3),这在某种程度上解释了为什么这类病毒关键致病蛋白经昆虫传播侵染水稻后能够与相同寄主因子互作。并且结合分子对接技术发现这类病毒蛋白与已知互作寄主因子OsMYC2、OsARF17、SLR1、OsNPR1的互作模式基本相同(图3),研究结果对揭示病毒模拟寄主因子逃避免疫的分子机理以及开发绿色、广谱的抗病毒化合物抑制剂提供重要理论意义和应用价值。
2)这类关键致病蛋白都有保守的无序结构域
虽然不同类型水稻病毒编码的关键致病蛋白在氨基酸序列上不具有任何相似性,但他们都有一段固有无序蛋白结构域(Intrinsically disordered regions, IDRs)。富含IDRs的蛋白一般无法折叠形成稳定的三维结构,因而在功能上常表现出高度灵活性,在某种程度上解释了为什么这类病毒蛋白既可以参与相关抗性蛋白的稳态调节,又能作为转录抑制子调控寄主转录。此外,这类蛋白还可以灵活地与多种寄主因子互作,形成复杂的生长-免疫调控网络,以应对外界环境的变化和多种病原菌的侵染,这种非经典结合方式通常被称为“便携式结合”。研究病毒-水稻互作网络有助于我们通过定点改造开发新颖广谱的水稻抗病毒种质资源,为今后农作物抗病遗传改良提供重要理论指导。
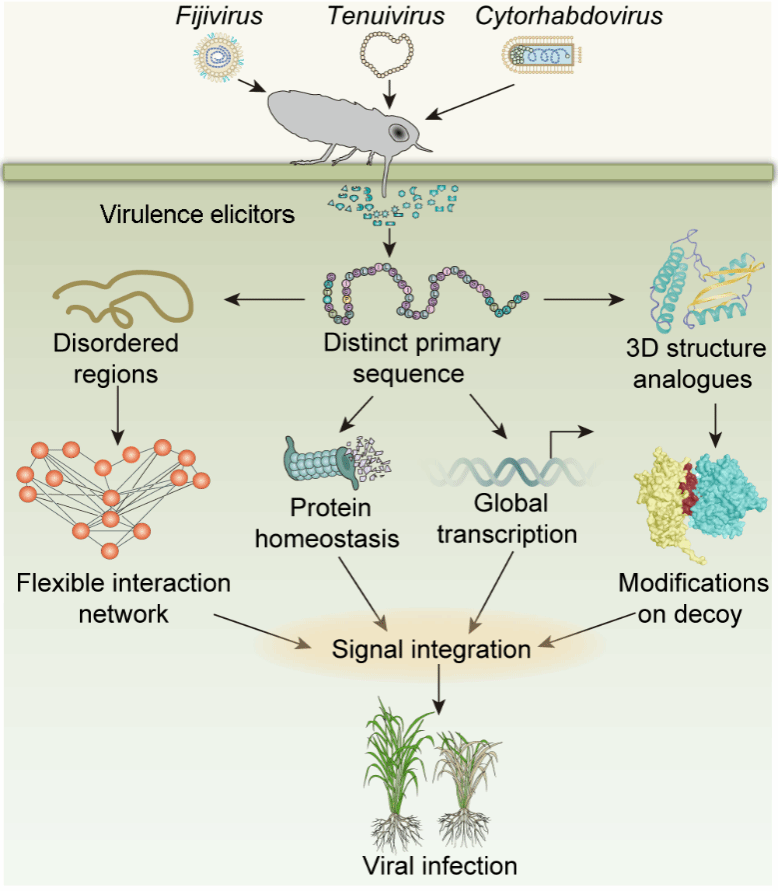
图3. 不同类型关键致病蛋白在空间结构以及生物学功能上的共性特征
本研究得到了国家重点研发计划、国家自然科学基、浙江省自然科学基以及第九届中国科协青年人才托举工程等项目的资助。论文第一作者为宁波大学植物病毒学研究所李路路副研究员,孙宗涛研究员为通讯作者,陈剑平院士提供了重要帮助和支持。